研究テーマ 2


生命を操作する;人工抗体

研究の目的

研究の背景

サブテーマ1:新たなコンセプトによる抗体薬の開発(AIDS治療抗体)

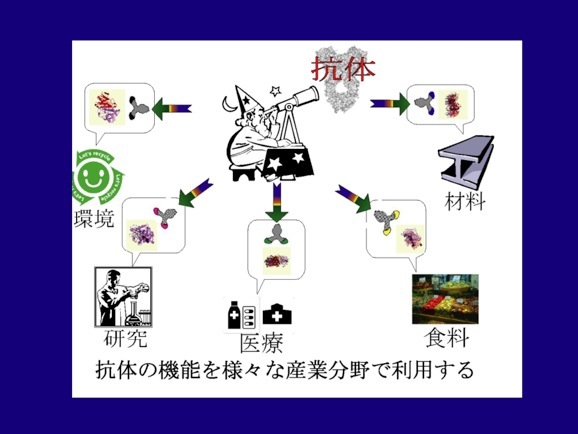
 抗体には予測不可能な多種多様な外来抗原を漏れなく認識して結合するものが必ず含まれているので、抗体と抗原との分子間相互作用のレパートリーの中には、生物が有する標的分子認識機構が総動員されていると考えられる。従って、抗体の抗原認識の分子機構を系統的かつ網羅的に解析できれば、機能性生命分子の有する標的分子認識の分子機構を総括的にとらえる事になる。
 免疫系における抗体分子の役割は、未知外来抗原に結合し、それに対する免疫反応を惹起することである。そのために、免疫系はどのような分子の侵入を受けてもそれに対処できるだけの多種多様な抗体群(naïve repertory)を予め保有しており、抗原刺激を受けると、それに結合できる抗体の、naïve repertoryの中からの選別と成熟を経て、強い結合力と高い特異性を有する抗体が創り出される。このとき、有限個数の抗体で無限に近い仮想外来異物(抗原)に対処するために、naïve repertoryに含まれる各抗体の標的分子に対する特異性にはある程度の許容範囲が存在する。抗体は標的分子の立体構造を識別するプローブとして使用できるが、抗原刺激により創出された抗体は、極限まで高められた結合力と特異性のために抗原分子そのものに対するプローブとしてしか使用できないのに対して、naïve repertoryに存在する成熟抗体のプロトタイプは、その特異性の曖昧さにより、抗原と類似の立体構造を探索するためのプローブとして使用可能である。

 本研究では、どのような分子に対してもそれを認識する抗体の遺伝子がクローニングできる技術(抗体ライブラリー)を用いて、抗体を標的分子認識のバイオナノマシンとして使用する研究・開発を行う。http://www.nikkan.jp/news/nkx0720091118aaac.html
 動物個体中で発現された総ての抗体遺伝子の増幅にPCR法が用いられ、得られた遺伝子のレパートリーを大腸菌中で発現させるためのベクターに組み込んで抗体ライブラリーが作られたが、スクリーニング効率の良いライブラリーの完成は1985年に既にスミスらが開発していたファージディスプレイ法の適用を待たなければならなかった(1991年)。本格的な抗体ライブラリーが発表されたのは1994年末であるが、黒澤らのグループは極めて性能の優れた抗体ライブラリーを作製した。

 動物免役法とは異なり任意の抗原の使用が抗体ライブラリーを用いると可能である。また、抗体ライブラリーを用いたスクリーニングにおける抗体の選択基準は、細胞内における抗体の発現とは異なり、抗体-抗原分子間相互作用のみに依存する。さらに、抗体ライブラリーのスクリーニングでは抗体と同時にその遺伝子も得る事ができ、これをもとに変異体抗体分子の作成が可能である。
 これまでに複数のステロイド(低分子化合物)、病因毒素タンパク質(生体高分子)、ウイルス粒子(高分子構造体)に対して抗体ライブラリーを用いたスクリーニングが実施され、標的分子に結合する抗体がその遺伝子とともに単離されており、これら抗体の抗原認識部位は抗原として使用した分子種のプローブ素子として、新たに機能性分子を設計する際に使用可能である。さらに、プロテインキナーゼやカルモジュリンに作用してその活性を制御する抗体クローンも得られており、これら抗体の抗原認識部位は、同様の活性をもつ別の生体分子の活性を制御する分子を設計する際の部品として使用できるものである。

 抗体ライブラリーを用いたスクリーニングにおける抗体の選択基準は、細胞内における抗体の発現とは異なり、抗体-抗原分子間相互作用のみに依存する。従って抗原結合能が高いものだけではなくて、低いものも得られる。結合能の高いものの重要性は言うまでもないが、ドラッグデザインのプロトタイプとしては結合能の低い抗体も貴重である。また、生体内では自己免疫を生じるようなエピトープは排除される機構が働いていると考えられるが、本方法ではそういった制約が存在しないので、標的分子に結合するという選択則のみにより選ばれた多種多様のエピトープに対する抗体が得られることが期待できる。こういった特性を活かして多種の抗原に対して抗体のスクリーニングを進めることで、標的分子認識マシーンの部品を網羅的にクローニングできる。抗体ライブラリーのスクリーニングでは抗体と同時にその遺伝子も得る事ができるので、得られた抗体の抗原認識部位に遺伝子工学により変異をいれることで、新規機能性分子の創製が可能であるが、個別のアミノ酸の置換による既存の方法に加えて、機能ドメイン/モジュール単位の組み換えによる新規抗体、さらには、抗体をプロトタイプとして使用する新規機能性分子の創製法の開発を進める。http://www.nikkan.jp/news/nkx0720091118aaac.html
 抗体ライブラリーを用いると、動物免疫法では得られないような、特異性や親和性の異なる様々な抗体が得られる。また、そういった抗体のcDNAも得られるので、タンパク質工学により抗体の機能の改変が可能である。
 本来、抗体は標的分子(抗原)を認識して結合はするが、それからはずれるようには設計されていない。しかし、抗体-抗原反応を自在にコントロール出来れば、抗体の使途は劇的に拡がる。
 本研究開発では、部位特異的導入法を用いて、コントロールユニット(光異性化分子、等)を導入することによる、機能制御が可能な抗体の開発を進めている。http://www.nikkan.jp/news/nkx0720091118aaac.html

サブテーマ2:抗体機能の制御法の開発

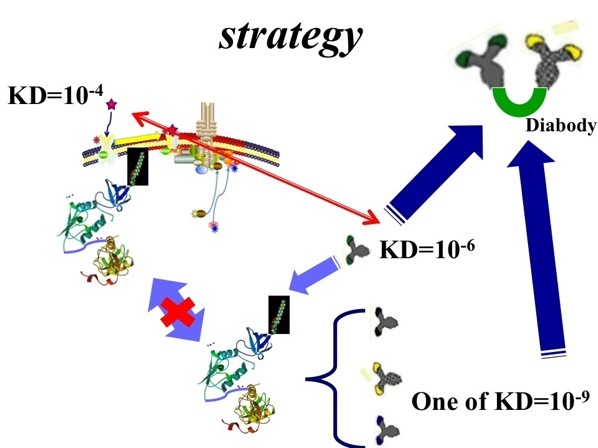
 ミリストイル化(飽和脂肪酸による翻訳後修飾)タンパク質は細胞膜との可逆的な相互作用によって、細胞の状態に応じて細胞膜と細胞質を移行することで様々な生理機能を担っている(Protein Science 9: 1905-1913, 2000、J.Biol.Chem. 278: 48898-48902, 2003、J.Mol.Biol. 338: 169-180, 2004、Proc.,Jpn., Acad.,Ser.B, 86:494-508, 2010)。感染後に発現すると宿主細胞内でミリストイル化されるHIVのnef遺伝子産物(HIV-Nef)は、生体内にもともと存在する他のミリストイル化タンパク質の働きに介在することでT細胞の機能を停止し、AIDSが発症すると考えられている(Protein Science 11: 529-537, 2002、Protein Sci. 14: 494-503, 2005)。遺伝子変異によりミリストイル化されないようになったNefを有する感染者ではAIDSが発症しないことから、Nefの機能にはそのミリストイル基が必須であることが分かった。さらに、ミリストイル化タンパク質の多くが細胞膜脂質ラフトにおいて機能することから、NefもT細胞のラフトにおいてその機能を阻害すると考えられる。
 ミリストイル化蛋白質は細胞の状態に応じてラフトから離れたり、あるいは、付け加わったりすることでラフトの機能チェンジを担っているが、迅速かつ柔軟にラフトが機能するためには、ミリストイル化蛋白質が状況に応じてすんなりとラフトから離れなければならない。それを可能としているのは、ミリストイル基と膜との弱い相互作用である。Nefのミリストイル化がAIDSの発症に必須であるということは、T細胞を殺すこと無くその機能だけを停止するには、この弱い相互作用が必須であることを示唆している。
 近年、本研究室では、独自の抗体ライブラリー法(特願2007-058458、出願日:2007年3月7日)を用いて、さらに、抗原を工夫することで、抗ミリストイル基抗体の開発に成功した(特願2013-088891、出願日:2013年4月19日)。
 本研究では、細胞が外部刺激に対して迅速、かつ、適切に応答するために細胞膜近傍で機能していて、その機能不全が各種疾患の原因となる脂質ラフトの作動原理を、そこでのシグナル処理を担うミリストイル化タンパク質に着目して解明する。そのために、ラフトにおけるミリストイル化タンパク質の機能を最も効果的に阻害していると考えられるHIV-Nefを手がかりにする。HIV-Nefがどのようにラフトの機能を停止しているのかが解れば、ラフトがどのように機能しているのか、その本質を理解できる。さらに、本研究で使用するプローブは、対象疾患治療のための分子標的薬のプロトタイプとなる。
http://www.nikkan.jp/news/nkx0720091118aaac.html